点滅光と皮質の模様
模様のない一様な点滅光を浴びると、蜂の巣や渦が見えることがある。興奮と抑制の 2 種類の細胞が並んだ場を一様な点滅で揺すり、どの速さの点滅でどんな模様が立つかを計算した。このページの図はすべて静止画で、点滅は再現していない。
なにか
目を閉じて一様な点滅光を浴びると、斑点や蜂の巣、縞、渦が見えることがある。フリッカー・フォスフェンと呼ばれ、1819 年に Purkinje が初めて記述した(Rule ほか 2011 の序論による)。光には模様がないので、模様は見る側で作られている。強い点滅光は光過敏性の発作を起こすことがあるので、このページは点滅を再現しない。
Rule・Stoffregen・Ermentrout(2011)は、一次視覚野を興奮性と抑制性の細胞が並んだ場とみなし、一様な周期入力で揺すると模様が立つことを示した。対称性の分岐理論を使って、低い振動数の点滅では六角形の模様が、高い振動数では風車・的・渦巻き(皮質の上では縞)が出る理由を示したとしている。ここでは同じ型の場を自分で組み、この話がどこまで再現するかを確かめた。論文の係数(τe = 10・τi = 20・aee = 10・aei = 12・aie = 8.5・aii = 3・θe = 2・θi = 3.5・σi = 2.5σe。一様な状態が約 13 Hz で減衰振動する)は本文に載っているが、ここの計算はそれとは別に、このギャラリーで選んだ値で回している。
振動する皿の水面に模様が立つファラデー波は、外から一様に揺すって模様を立てる点で同じ仕組みである。そこで使った Floquet 乗数の物差しを、そのまま皮質の場に当てた。
模型
場所ごとに興奮 E と抑制 I の 2 つの量を置く。E はまわりの E から励まされ、I から抑えられる。I は E から励まされる。結合はガウス形で、抑制の届く幅を興奮の 1.8 倍にした。入力は興奮の側にだけ入り、明かり(強さ A)と暗がり(0)を繰り返す矩形波である。時間は興奮側の時定数、長さは興奮の結合の幅を単位にして測った。
入力が一定なら、この場は模様を作らない。入力を 0 から 0.8 まで変えても、どの波数の乱れも減衰した。いちばん減衰の遅い乱れは波数 0.70 のもので、角振動数 1.26 で振動しながら消える。模様の種はあるが、放っておけば育たない状態である。
2 つの舌
点滅させると、一様な場は点滅と同じ周期で上下する。そのまわりの小さな乱れが 1 周期で何倍になるかが Floquet 乗数で、大きさが 1 を超えると模様が育つ。明かりを周期の 25% にした点滅では、模様の出る範囲が 2 つに分かれた。
高い側の範囲は角振動数 2.015 に底があり、点滅の強さ 0.225 で模様が出はじめる。乗数は −1 で、模様は 1 周期ごとに明暗を反転し、2 周期でもとに戻る。低い側の範囲は 1.018 に底があり、強さ 0.361 から模様が出る。乗数は +1 で、模様は点滅と同じ周期で繰り返す。2 つの底の比は 1.980 で、ほぼ 2 倍の関係にある。2 つの範囲は角振動数 1.468 で入れ替わる。どちらの範囲でも、選ばれる波数は 0.74〜0.76 で、点滅のないときにいちばん減衰の遅かった波数に近い。
乗数は、乱れを 2 行 2 列の方程式に直して求めた。これとは別に、1 次元の場そのものを時間積分して 1 周期あたりの倍率を測ると、4 つの条件で 6 桁目まで一致した(差は最大で 2.2×10⁻⁵)。
明かりの割合で舌が消える
明かりと暗がりを半分ずつにすると、高い側の範囲は残り(底は 2.030、強さ 0.183)、低い側の範囲は強さ 0.9 まで上げても開かなかった。矩形波をフーリエ級数に直すと理由が見える。明かりが 50% の矩形波には偶数次の高調波がなく、2 次の成分は 0 である。明かりを 25% にすると、2 次の成分は基本波の 0.707 倍になる。低い側の範囲は、点滅の 2 倍の振動数の成分が場を揺すってできていた。
点滅の強さを 0.3 に固定して、高い側の底の振動数 Ω₁ の 1/n の近くを探すと、n = 1・2・3 に倍率の山があった。乗数の符号は順に −1・+1・−1 で、ファラデー波の Mathieu 方程式の第 1・第 2・第 3 の舌の符号と同じ並びになる。n = 4 には山がない。矩形波の 4 次の成分は、明かりが 25% でも 50% でも 0 である。
六角形か、縞か
2 次元の場で、小さな乱れから始めて 800〜3,000 周期ぶん計算した。模様の形は、いちばん強い波から 60° と 120° の向きにある波の強さの比で測った。縞なら 0、六角形なら 1 になる。
低い側(乗数 +1)では、模様が出はじめる強さのすぐ上(0.38)で六角形が残った(2,000 周期で 0.997)。残るのは、点の位置で興奮が弱まる向きの六角形である。逆向きの六角形を種にしても模様は保たれたが、振幅は小さかった。強さを 0.42 に上げると六角形は縞に替わった(1,500 周期で 0.000)。六角形を種にして始めても縞に移る。
高い側(乗数 −1)では、1 周期ごとに明暗が反転するので、向きの違う 2 つの六角形は同じ模様の半分ずれた姿になる。この反転は計算でも確かめられた(続く 2 周期の相関は −0.994)。文献は、この対称性のために六角形が選ばれず縞になるとしている。ここでの結果は半分だけ合った。底より低い振動数(1.8、強さ 0.36)では縞になった。底の近く(2.04)では、強さ 0.32 で乱れから六角形が育ち(1,500 周期で 0.983)、強さ 0.26 では縞を種にすれば縞が、六角形を種にすれば六角形が 800 周期残った。
「低い振動数で六角形、高い振動数で縞」は、この係数では成り立たなかった。低い側にも縞があり、高い側にも六角形がある。成り立ったのは、乗数 +1 の模様が点滅と同じ周期で繰り返し、乗数 −1 の模様が 2 周期でひとめぐりすることと、+1 の側でだけ六角形の向きに区別があることである。
視野に戻す
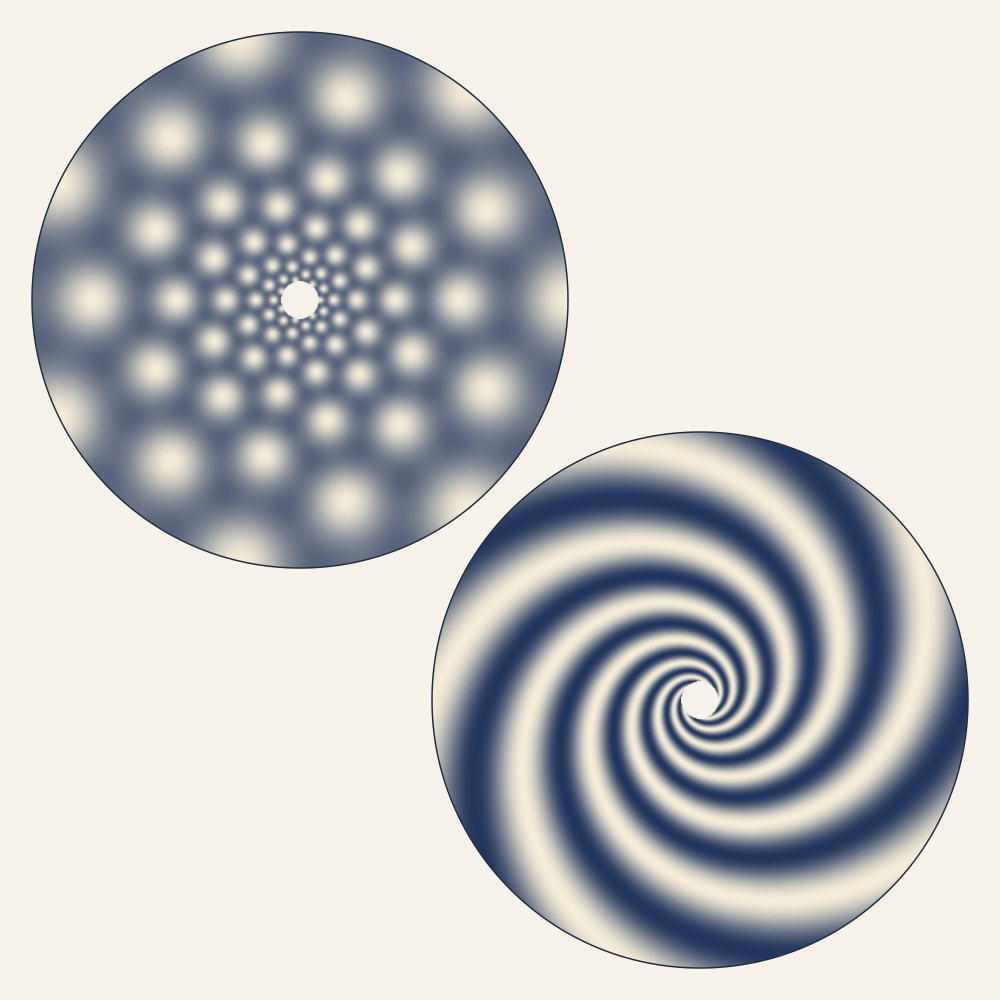
視野から一次視覚野への写像は、ほぼ複素対数になる(Rule ほか 2011 が Dayan と Abbott の教科書を引いて書いている。数式で最初に定式化したのは Schwartz 1977 だと、Ribeiro ほか 2025 の総説にある)。視野の中心からの距離を r、方位を θ とすると、皮質の上の座標は ln r と θ である。皮質の上の六角形をこの写像で視野に戻すと、中心へ向かって細かくなる蜂の巣になる。斜めの縞は対数螺旋になり、腕の本数は縞が θ の向きに何回繰り返すかで決まる。冒頭の図はこの 2 つを描いたもので、腕は 5 本にした。
どう作ったか
一様な場の周期解を 4 次のルンゲ・クッタ法で求め、同じ刻みで波数ごとの 2 行 2 列の基本行列を積んで乗数を出した。模様が出はじめる強さは二分法で、波数の山と範囲の底は黄金分割で詰めた。時間の刻みを半分にし、波数の刻みを半分にしても、底の位置と強さは表示した桁で変わらなかった。場の直接積分では、結合の畳み込みを自前の高速フーリエ変換で計算している。2 次元の箱は、六角形がちょうど収まる横 4 波長、縦 3.46 波長の周期境界にした。
確かめていないこと。係数は自分で選んだもので、原論文の値でも生理の測定値でもない。時定数の実測値に当たっていないので、振動数を Hz に直していない。六角形と縞の入れ替わりは、箱の大きさと格子(32×32)を 1 通りでしか見ていない。高い側の底の近くで六角形と縞のどちらが最後に残るかは、3,000 周期では決まらなかった。人が実際に見る模様との対応は確かめていない。
出典
- 身近
- 一様な点滅光で見える幾何学模様(フリッカー・フォスフェン)。J. E. Purkinje (1819) の記述と J. R. Smythies (1959) の詳しい報告は、Rule ほか 2011 の序論で知った(原論文は開いていない)
- 数理
- M. Rule, M. Stoffregen, B. Ermentrout, "A Model for the Origin and Properties of Flicker-Induced Geometric Phosphenes", PLoS Comput Biol 7(9): e1002158 (2011)。式の型と、六角形と縞の予測はこの論文による。PMC の本文で読み、係数は本文の式の画像で確かめた(ここでの計算の係数は自分で選んだ別の値)。視野から皮質への対数の写像: E. L. Schwartz (1977)(原論文は開いていない。Ribeiro・Benson・Puckett, J. Vision 2025 の総説と Rule ほか 2011 で確かめた)
- 親戚
- 形の定数と対数の写像・皮質の縞と六角形・蜘蛛の巣の幻視と、向きごと回す対称性・ファラデー波・チューリング・パターン・周辺ドリフトと扇の弧
- 生成
- generators/flicker.js(flicker.svg 視野に戻した 2 つの模様・flicker-book.svg 帳簿)。2 次元の長い計算の結果は generators/flicker-select.json に置いた